把外源基因稳定导入人造血干细胞(HSC)是造血发育研究、血液病机制研究与细胞工程化改造的共同前提。慢病毒可感染分裂期与非分裂期细胞,并把外源基因整合进宿主基因组实现稳定表达,是向 HSC 递送基因的主要工具。但静息态 HSC 与髓系造血细胞长期被列为慢病毒「难转导」细胞类型——瓶颈主要不在病毒本身,而在包膜与靶细胞受体的匹配程度。英诺思以包膜工程化改造为路径,提供靶向人 CD34+ HSC 的 LVh34 与靶向人源 CD45+ 白细胞的 LVh45,并在对 VSV-G 高度抵抗的 KG-1 模型上完成了同批次平行验证。(说明:病毒载体介导的外源基因递送在文献中通常称「转导/transduction」,本栏目名按「病毒转染」统一表述,正文涉及机制时仍沿用文献用词「转导」。)
为什么造血细胞难转导:四个具体环节
以 VSV-G 为伪型包膜的慢病毒对 HEK293T、HeLa 等贴壁细胞系可轻松达到 90% 以上转导效率,但换到造血细胞就明显下降。原因不止一个:
- 受体匹配不足:VSV-G 通过低密度脂蛋白受体(LDL-R)介导结合与进入;静息态人 CD34+ 细胞与未刺激 T/B 细胞 LDL-R 表达很低,结合与膜融合环节同时受限(Amirache F, et al. Blood, 2014)
- 接触机会有限:悬浮生长的造血细胞与病毒颗粒处于相对运动,碰撞概率低,这也是悬浮细胞常被迫采用离心感染的原因
- 静电与糖萼屏障:细胞膜带负电、糖蛋白层较厚,与同样带负电的病毒颗粒之间存在电荷排斥
- 入胞后的多重阻断:内体/溶酶体滞留与降解、逆转录与入核效率、宿主限制因子,以及启动子在造血细胞中易沉默(如 CMV)
两条靶向线:CD34 与 CD45 分别解决什么问题
两个靶标指向两类不同的研究需求:CD34 指向干/祖细胞的干性维持与谱系分化,CD45 指向全部有核造血细胞的基因功能与工程化改造。
| 货号 | 产品名称 | 靶标与适用细胞 | 规格 / 储存 |
|---|---|---|---|
| LVh34 | 靶向人造血干细胞慢病毒 | 人 CD34,适用于人 CD34+ 造血干/祖细胞(HSC) | 100 μL × 10 / −80 °C |
| LVh45 | 靶向人源 CD45 慢病毒 | 人源 CD45,适用于人源 CD45+ 白细胞(T、B、NK、单核、粒系及祖细胞) | 100 μL × 10 / −80 °C |
两个产品共享同一套操作特点,这三点直接决定实验排期:分选当天即可感染(无需等待培养或激活,缩短体外操作时间)、无需离心感染(减少离心对细胞的机械影响)、感染效率大于 30%(说明书标注,具体随 MOI 与细胞状态变化)。
KG-1 模型实测:同一 MOI 下的平行对比
KG-1 为人急性髓系白血病细胞系,髓母细胞形态、悬浮生长,表型 CD34+/CD45+;文献报道其对 VSV-G 伪型载体高度抵抗(Boso G, Somia NV. PLOS ONE, 2015),因此适合作为「人造血干细胞类型细胞」的体外评价模型——在难转导背景上观察包膜改造带来的差异。
实验以普通慢病毒(VSV-G 广谱伪型)为对照,在同批次、同 MOI(10、50)条件下感染 KG-1,感染后经流式检测 FITC 通道阳性率。
| 组别 | 10 MOI | 50 MOI | 相对普通慢病毒 |
|---|---|---|---|
| 普通慢病毒(VSV-G 广谱伪型) | 12.8% | 22.8% | 基准 |
| LVh34(靶向人 CD34+ HSC) | 19.1% | 47.4% | +6.3 pp(约 1.49 倍)/ +24.6 pp(约 2.08 倍) |
| LVh45(靶向人源 CD45+ 白细胞) | 36.6% | 44.1% | +23.8 pp(约 2.86 倍)/ +21.3 pp(约 1.93 倍) |
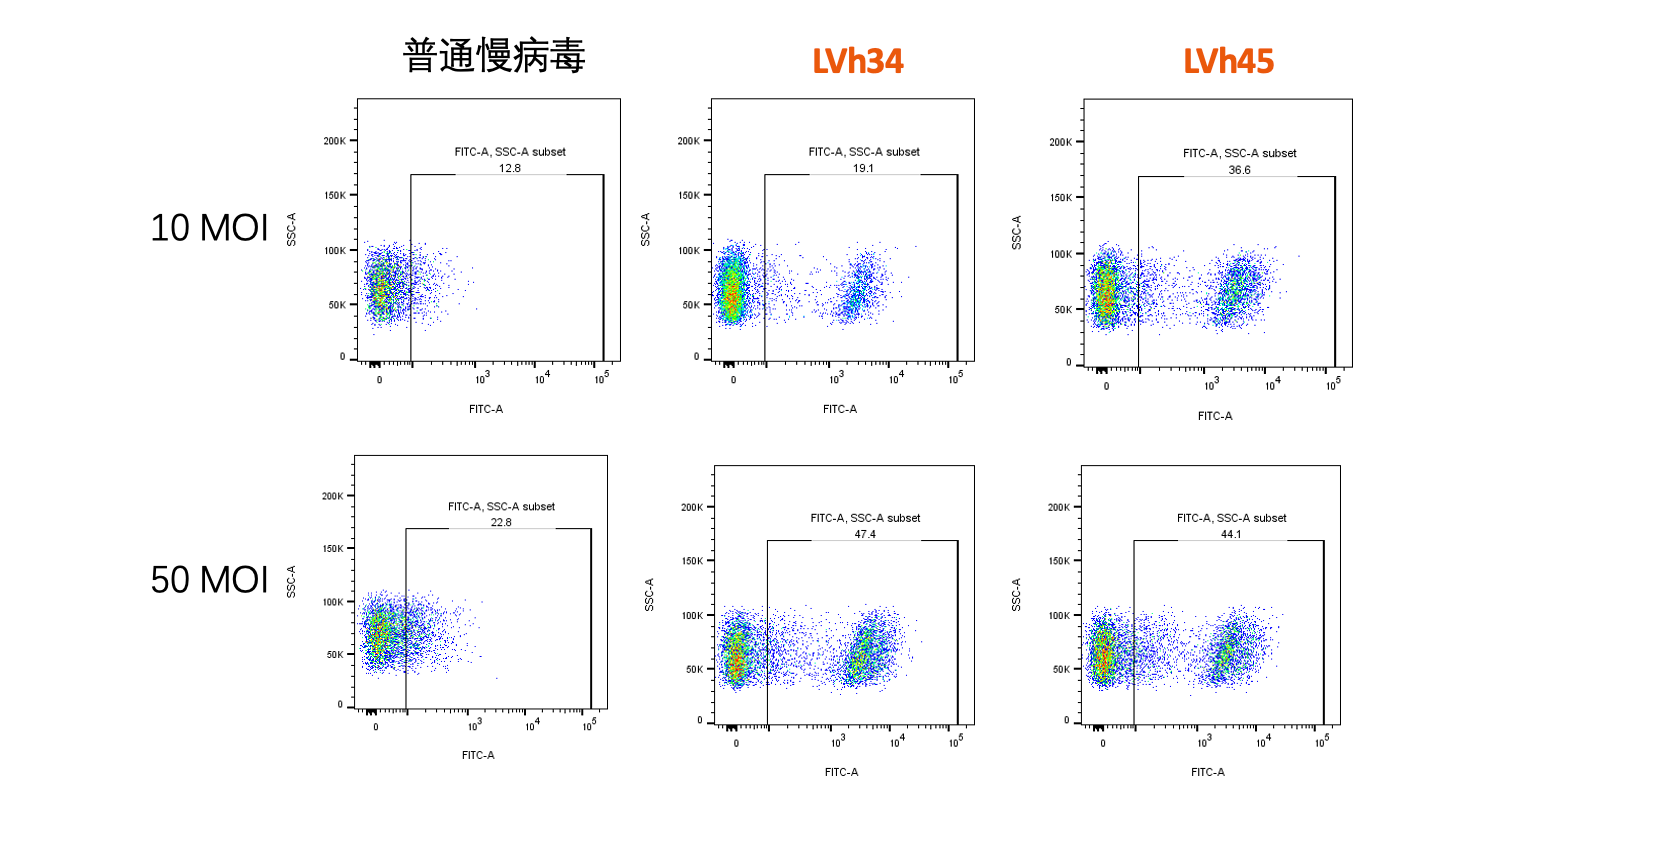
读法上有两点值得注意:LVh34 的优势随 MOI 升高而放大(10 MOI 约 1.49 倍 → 50 MOI 约 2.08 倍),说明瓶颈偏向「进入效率」而非「表达元件」;LVh45 在低 MOI 时提升更明显(10 MOI 约 2.86 倍),50 MOI 时与 LVh34 接近,提示两条包膜在中高剂量下趋于饱和。
分选—感染流程:从样本到阳性率
- 1. 样本准备 骨髓 / 脐带血 / 动员外周血经 Ficoll 密度梯度离心获取单个核细胞(MNC),去红细胞与碎片
- 2. CD34+ 阳选 anti-human CD34 Nanobeads(PH034)标记 → M/LS 柱富集 → 洗脱;起始丰度低于 1% 时按说明书第 11 步二次过柱
- 3. 纯度确认 流式检测 CD34+(建议同时报 CD34+CD38-),活率 ≥ 90% 再进入感染
- 4. 接种与加毒 分选当天按目标密度接种,直接加入 LVh34(无需激活、无需离心);MOI 建议设 10 / 20 / 50 梯度
- 5. 可选短时预处理 CD34+ HSC 可用 SCF 100 ng/mL + TPO 50 ng/mL + Flt3L 100 ng/mL 预处理 12–24 h,兼顾感染效率与存活
- 6. 培养与换液 37 °C、5% CO2 培养,按细胞状态补液或半量换液,避免过度稀释病毒与细胞
- 7. 读出 感染后 24–72 h 流式检测 GFP 阳性率与 MFI;同时设普通 VSV-G 慢病毒对照,用于评估靶向特异性
如果下游是移植或长期培养,建议在第 4 步之后保留一份未感染细胞作为基线,并在 7–14 天后复测阳性率——瞬时表达与稳定整合的差别,往往要等几天才显现。
使用注意与常见误区
- 不要用普通慢病毒的效率预期 HSC:VSV-G 在贴壁细胞系上的 90% 不能外推到 CD34+ 细胞
- 不要只报「阳性率」不报 MOI 与检测时间:这两项直接决定数字大小,缺一不可比
- 流式抗体要按细胞总数足量加:分选后细胞浓度高,染色不足会低估阳性率;建议统一用 FACS Buffer 而非 PBS
- 避免反复冻融病毒:−80 °C 保存,取出后尽快用完,废液与耗材按实验室规范处理
- 激活型磁珠不等于分选磁珠:ActBeads™ 会启动 T 细胞激活信号,用于不期望激活的下游实验时需换非激活方案
- CD45 靶向不等于「只感染白细胞」以外没有边界:CD45 覆盖全部有核造血细胞(含祖细胞),做谱系特异结论时需配合其他标志物
实验要点
- 瓶颈在包膜匹配:静息 HSC 的 LDL-R 低表达,VSV-G 伪型慢病毒天然吃亏
- LVh34 靶向人 CD34+ HSC、LVh45 靶向人源 CD45+ 白细胞,同平台、同操作
- KG-1 模型 50 MOI:LVh34 47.4%(普通慢病毒 22.8%,约 2.08 倍)、LVh45 44.1%
- 分选当天即可感染、无需离心;MOI 设梯度,24–72 h 读流式
- 数据为内部验证、模型为细胞系,不外推为原代 HSC 的效率承诺
常见问题
LVh34 与 LVh45 怎么选?
看研究对象的谱系定位:做干/祖细胞(CD34+CD38-、CFU、移植重建)用 LVh34;做成熟白细胞或混合造血群体(T/B/NK/单核/粒系)的基因功能与工程化,用 LVh45。两者可平行使用,但结论不能互相替代。
KG-1 的数据能直接外推到原代 CD34+ 细胞吗?
不能。KG-1 是髓系白血病细胞系,用于在「难转导」背景上比较包膜改造的相对优势;原代 HSC 的受体表达、代谢状态与静息程度都不同,绝对值需自行标定。建议先做小规模 MOI 梯度预实验。
为什么强调「分选当天即可感染」?
原代造血细胞在体外每多培养一天,干性相关基因表达与植入能力都会下降。省去激活与等待,等于把细胞状态活跃的一段窗口留给基因递送;同时省去离心也减少了机械损伤。
感染效率不到预期,先查什么?
按顺序排查:细胞活率是否 ≥ 90%、MOI 与病毒批次的滴度、加毒时的细胞密度与体积、是否误用 PBS 稀释、检测时间是否过早(< 24 h)、流式抗体是否足量。包膜匹配只是其中一环。