本文导读
2026-07-06,深圳湾某实验室(应客户要求匿名)用英诺思 anti-mouse CD45 Nanobeads(PM045)完成一组有柱阳选实验。
同一份小鼠样本:分选前 CD45⁺ 占 8.87%;阳选产物 95.0%(相对起始富集约 10.7 倍);同一流程收集的流穿液中 CD45⁺ 仅剩 0.33%(相对去除 96.3%)。一次上柱,阳选与去除两个用途同时得到验证。
一、CD45:一个通道区分「造血」与「非造血」
CD45 是一种 180–240 kD 的糖蛋白,也被称作白细胞共同抗原(LCA)、T200 或 Ly-5。它是蛋白酪氨酸磷酸酶(PTP)家族的成员,表达于除成熟红细胞和血小板以外的所有造血细胞表面——这一句是它作为「泛白细胞标记」的全部依据:不需要叠 CD3、CD19、CD11b 等一串谱系标记,单靠一个通道就能把造血来源细胞与非造血细胞分开。
它的结构决定了它的功能。胞外区由外显子 4、5、6 的差异剪接产生 A、B、C 三个决定簇,组合出 CD45RA、CD45RB、CD45RC 与 CD45RO 等亚型;胞内段则带有两个串联的 PTP 结构域。在 TCR 与 BCR 的信号转导中,CD45 通过去除 Src 家族激酶 C 端的抑制性磷酸化位点,把激酶从「自抑制」状态放开,是抗原受体信号启动的必要环节。也正因为它调的是信号阈值而不是某一条专属通路,CD45 的缺失或亚型切换会同时影响 T 细胞、B 细胞的激活与发育。
把它当成分选靶点,有三个特点值得先说清楚:
- 表达量高——CD45 在每个白细胞表面都有数十万量级的拷贝,标记信号强,是磁珠阳选里比较「好抓」的靶点,不需要靠放大体系去凑信号。
- 覆盖全部亚群——T、B、NK、单核、巨噬、DC、粒细胞、造血祖细胞都在表达,阳选得到的是一支混合白细胞群,而不是某一亚群。实验中常用的小鼠抗 CD45 克隆识别全部亚型,因此不存在「只抓到 CD45RA⁺ 那部分」的偏倚。
- 糖基化重、表位可及性随亚型变化——不同亚型的糖基化程度差异明显,抗体克隆识别的外显子产物不同,染色强度就会不同。这是做 CD45 定量时最容易忽略的变量。
表 1 CD45 作为分选靶点的三个属性
| 属性 | 对分选的意味 |
|---|---|
| 表达谱:除成熟红细胞与血小板外的全部造血细胞 | 阳选得到混合白细胞;去除可得到非造血细胞,两个方向都成立 |
| 表达量高、膜表面密集 | 磁珠标记饱和快,10 min 孵育即可完成标记 |
| 亚型多、糖基化重 | 不同克隆识别的表位不同,跨实验对比纯度前须确认克隆一致 |
二、同一支试剂、两种用法:阳选与去除
CD45 磁珠的有趣之处在于:它既是阳选试剂,也是去除试剂,区别只在于你收哪一管。上样后随重力流出的是流穿液,柱上截留的是 CD45⁺;洗涤 3 次的洗出液并入流穿,最后用柱塞推压洗脱得到阳选产物。
表 2 两种用法的产物与下游
| 用法 | 收哪一管 | 产物 | 典型下游 |
|---|---|---|---|
| 阳选(positive selection) | 洗脱产物 | 富集的白细胞群 | 肿瘤浸润免疫细胞富集、组织消化液中免疫细胞纯化、流式前提高目标事件占比 |
| 去除(depletion) | 上样流穿 + 3 次洗涤液 | CD45⁻ 非造血细胞 | 肿瘤细胞原代培养、成纤维细胞与上皮细胞分离、类器官起始细胞、去除白细胞污染 |
三、这次实测怎么做的:单份样本、三管取样
数据由深圳湾某实验室在 2026 年 7 月 6 日采集(原始流式文件名示采集日 20260706),2026 年 10 月反馈至英诺思。客户按 PM045 说明书(Version 26.01)的标准流程操作:组织消化并裂红制备单细胞悬液 → AO/PI 计数 → 按 1×10⁸ cells/mL 重悬 → 加 100 μL/mL 磁珠 → 4 °C 孵育 10 min → 加 5 倍体积 FACS Buffer、400×g 离心 5 min 去上清 → 重悬上柱 → 收集流穿 → 洗涤 3 次(洗出液并入流穿)→ 洗脱。
客户在三个位置各留了一管上机:上柱前的起始样本、洗脱得到的阳选产物、上样与洗涤合并的流穿液。三管都用 CD45-APC 染色,采集约 10,000 个事件后分析。
表 3 检测方案
| 项目 | 内容 |
|---|---|
| 客户单位 | 深圳湾某实验室(应客户要求匿名) |
| 数据采集日期 | 2026-07-06(原始流式文件名所示) |
| 数据反馈时间 | 2026-10-21 |
| 样本 | 小鼠单细胞悬液一份;CD45⁺ 起始比例 8.87%(组织来源客户未披露) |
| 分选试剂 | 英诺思 anti-mouse CD45 Nanobeads(PM045,Version 26.01) |
| 分选方式 | 有柱阳选:一次上柱,同时收集洗脱产物与流穿液 |
| 检测节点 | 上柱前 / 阳选产物 / 流穿液,共三管 |
| 染色与采集 | CD45-APC(RL1-H 通道);三管均采集约 10,000 个事件 |
| 设门链 | FSC-H / SSC-H 去碎片 → FSC-H / FSC-A 去粘连(Single Cells)→ SSC-H / CD45-APC 设 CD45⁺ 门 |
| 客户未提供 | 分选柱规格、上样细胞总数、各步细胞计数与活率、死活染料数据 |
四、实测结果:8.87% → 95.0%,流穿液 0.33%
三个节点的 CD45⁺ 占比如下表。起始 8.87%,阳选产物 95.0%,流穿液 0.33%。
表 4 三个节点的 CD45⁺ 占比
| 节点 | CD45⁺ 占比 | 相对起始 | 说明 |
|---|---|---|---|
| 上柱前(起始样本) | 8.87% | 1× | 每 1,000 个细胞约 89 个 CD45⁺,非造血细胞占绝对多数 |
| 阳选产物(洗脱) | 95.0% | 约 10.7× | 非靶(CD45⁻)残留 5.0% |
| 流穿液(去除) | 0.33% | 起始的 3.72% | CD45⁻ 占 99.67%,相对去除 96.3% |
把两个产物的数字放到一起看更直观:阳选端把 CD45⁺ 从 8.87% 提到 95.0%,同一流程的流穿端把 CD45⁺ 从 8.87% 压到 0.33%。一个进样、两个产物、两个方向都够用,这是 CD45 这类泛白细胞标记做磁珠分选的价值所在。
五、流式图与设门链:三管原始读数
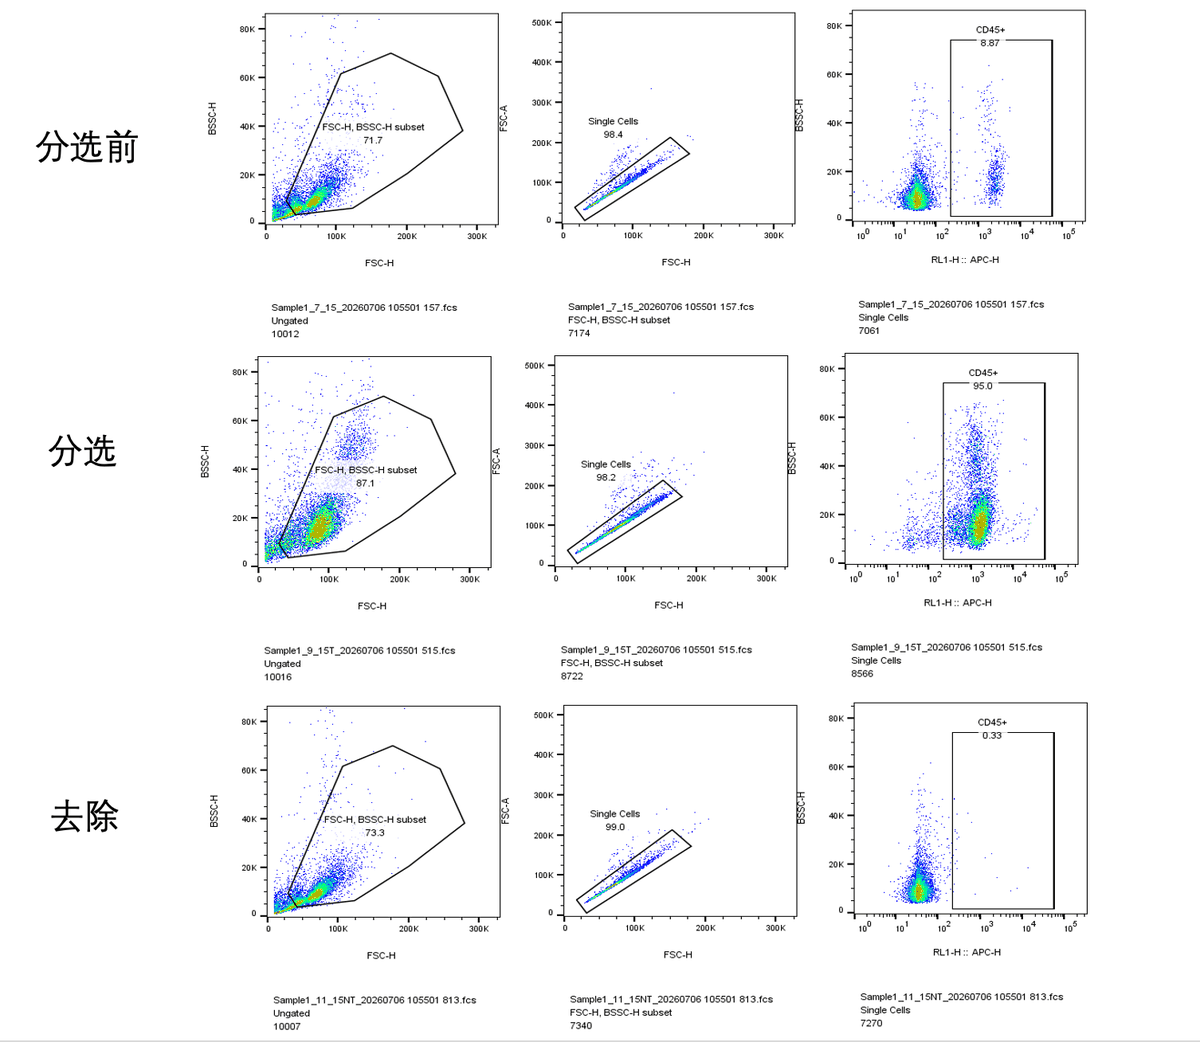
三管读数逐项记录如下,方便复核计数逻辑:
表 5 三管流式原始读数
| 管 | 采集事件 | FSC/SSC 门内 | Single Cells | Single Cells 事件数 | CD45⁺ |
|---|---|---|---|---|---|
| 分选前 | 10,012 | 71.7% | 98.4% | 7,061 | 8.87% |
| 阳选产物 | 10,016 | 87.1% | 98.2% | 8,566 | 95.0% |
| 流穿液 | 10,007 | 73.3% | 99.0% | 7,270 | 0.33% |
设门链是常规三步:先用 FSC-H / SSC-H 去掉碎片与细胞团,再用 FSC-H / FSC-A 排除粘连细胞(三管 Single Cells 均在 98% 以上,说明样本分散性不错),最后在 SSC-H / CD45-APC 上设 CD45⁺ 门。本轮没有预圈 CD45 白细胞群、也没有死活染料通道——CD45 本身是泛白细胞标记,再用它预圈等于循环论证;但缺少死活染料意味着门内可能混入少量 CD45⁺ 的死细胞或碎片,这是需要在解读时记住的口径边界。客户未披露门边界的划定细节。
六、数据解读:阳选端 10.7 倍、去除端 96.3%
阳选端:从 8.87% 到 95.0%
95.0% ÷ 8.87% ≈ 10.7 倍富集,绝对提升 86.13 个百分点。换成大白话:起始每 1,000 个细胞里约 89 个 CD45⁺,产物里约 950 个,非靶细胞从 911 个降到 50 个。
需要强调的是,富集倍数只与纯度有关,与回收了多少细胞无关。本轮客户没有提供分选前后的细胞计数,因此我们不换算得率或回收率——一个 10.7 倍的富集,可能是收回了 90% 的目标细胞,也可能只收回了 40%,仅凭纯度无法区分。若要在工艺开发中评估试剂表现,分步计数与活率(推荐 AO/PI)是必须补上的另一半。
去除端:流穿液残留 0.33%
0.33% 相对起始 8.87% 只剩 3.72%,即相对去除 96.3%;绝对下降 8.54 个百分点。对于一个以「去除白细胞」为目的的实验,这个量级通常已经够用——绝大多数非造血细胞下游实验(原代培养、类器官起始、单细胞悬液制备)不要求残留低于 0.1%。
但这个数字要带着误差一起读。0.33% 对应的是约 24 个门内事件(0.33% × 7,270)。按泊松计数误差估算,其 95% 区间大致在 0.21%–0.49%;换句话说,「残留极低」这个结论是稳的,「0.33%」这个具体数值不宜当作精确值。若下游对少量污染极敏感(如单细胞测序、原代肿瘤细胞培养),建议再补一次去除,或加设死细胞与谱系门后再判断。
与说明书示例的对照
表 6 本次实测与说明书示例对照
| 指标 | 本次客户实测 | 说明书示例 | 差值 |
|---|---|---|---|
| CD45⁺ 起始比例 | 8.87% | 约 10% | — |
| 阳选产物 CD45⁺ | 95.0% | 96.8% | −1.8 个百分点 |
| 流穿液 CD45⁺ 残留 | 0.33% | 0.29% | +0.04 个百分点 |
| 相对起始富集 | 约 10.7× | 约 9.7× | — |
两份数据在起始比例相近(8.87% vs 约 10%)的前提下,纯度差 1.8 个百分点、残留差 0.04 个百分点,属同一量级。这是第三方实验室用同一套说明书流程独立复现出说明书示例水平的一次记录,对判断流程可重复性来说,比任何自测数据都更有说服力;但它依然只是两份样本,不构成批间一致性结论。
七、PM045 产品概述与规格
anti-mouse CD45 Nanobeads(PM045)采用 anti-mouse CD45 抗体直接偶联纳米磁珠:抗体与磁珠之间不经链桥接,标记一步完成,4 °C 孵育 10 min 后即可上柱。在有柱分选的磁场中,CD45⁺ 细胞被截留在分选柱内,其他细胞随重力流出,从而实现对 CD45⁺ 细胞的分选或去除。分选得到的细胞可直接用于流式检测、DNA/RNA 提取及后续细胞功能实验。
表 7 PM045 规格与货号
| 货号 | 规格 | 可处理细胞数 |
|---|---|---|
PM045L | 2 mL | 2×10⁹ cells |
PM045M | 1 mL | 1×10⁹ cells |
PM045S | 0.2 mL | 2×10⁸ cells |
表 8 试剂盒组分、缓冲液与柱载量
| 项目 | 内容 |
|---|---|
| 试剂盒组分 | Anti-mouse CD45 Nanobeads(4 °C 保存、避免冷冻;缓冲液为 PBS + 0.1% BSA) |
| 分选缓冲液 | FACS Buffer:1× PBS + 0.02% EDTA + 2% FBS |
| 磁珠用量 | 100 μL/mL(细胞按 1×10⁸ cells/mL 重悬) |
| 孵育条件 | 4 °C 孵育 10 min |
| M 柱载量 | 标记细胞 <1×10⁷、总细胞 <2×10⁸;磁极 M1/M8;润洗 0.5 mL、洗涤 3×0.5 mL |
| L 柱载量 | 标记细胞 <1×10⁸、总细胞 <2×10⁹;磁极 L1/L4;润洗 3 mL、洗涤 3×3 mL |
| 样本前处理 | 组织消化并裂解红细胞后制备单细胞悬液,70 μm 无菌尼龙滤网过滤 |
八、操作要点:从 10 min 孵育到第二根柱
流程本身不复杂,容易出错的都是「顺序」和「收液」这两类细节。按说明书顺序列出关键节点:
九、使用注意事项
- 用 FACS Buffer,不要用 PBS——说明书明确提示,用 FACS Buffer 而非 PBS 操作可提高细胞得率与活率;免疫细胞对渗透压敏感,缓冲液配错几分钟内就能让活率掉下来。
- 磁珠严禁冷冻——4 °C 保存,避免反复冻融。冻过的磁珠会聚集,直接表现为柱上堵床与纯度下降。
- 孵育时间按说明书——PM045 为 4 °C 10 min,PH034 为 4 °C 30 min,不同产品的抗体克隆与偶联密度不同,条件不能互换。
- 控制柱载量——超过载量会让非靶细胞被一起挤进终产物。M 柱标记细胞上限 1×10⁷、L 柱 1×10⁸;样本细胞总量不明时宁可选大一号的柱。
- 流穿液要「上样 + 3 次洗涤」全收——这是去除用法得率的主要来源,倒掉洗涤液是常见失误。
- 表位占用与后续流式——阳选磁珠粒径约 50 nm,只占据细胞约 20%~30% 的抗原表位,不影响后续流式染色,也不需要选择特殊的抗体克隆号。这是纳米磁珠阳选路线的共有特性(进口同类产品亦然),不作为与进口方案的差异点;纳米级磁珠不阻断细胞功能,阳选产物无需脱珠即可用于后续功能实验与动物回输。
- 全程无菌——分选柱、缓冲液与收集管均需无菌;下游若做培养或转导,建议在超净台内完成过柱与洗脱。
十、常见问题
一次上柱,阳选产物和去除产物能同时拿到吗?
可以,取决于你收集哪一管。上样后随重力流出的是流穿液,洗涤 3 次的洗出液也应并入流穿液——步骤 8–9 合并起来才是完整的 CD45 去除产物;停留在柱内、最后用柱塞推压洗脱的是 CD45⁺ 阳选产物。本轮客户同时留了三管(上柱前、洗脱产物、合并流穿液),因此一次实验验证了两个用途。需要注意细胞总量守恒:分成两管意味着各自只拿到一部分,任何一管的得率都不能按「全部样本」去算。
95.0% 与说明书示例的 96.8% 差 1.8 个百分点,算批次差异吗?
不能这样判断。本轮是单份样本、单次实验,没有平行管也没有批间重复,1.8 个百分点落在流式检测与操作波动的正常范围内;说明书示例(起始约 10%、纯度 96.8%、流穿残留 0.29%)是另一个样本上的记录。要判断批间一致性,至少需要同一批试剂、同一份样本、3 次以上平行,并按同一设门策略统计。
起始 CD45⁺ 只有 8.87%,会不会拉低阳选纯度?
本轮没有出现明显拉低:8.87% 与说明书示例的「约 10%」属同一量级,产物 95.0% 与示例 96.8% 相差 1.8 个百分点。但起始比例继续下降时,非特异滞留会被放大——非靶细胞越占绝对多数,被一起带进产物的少量细胞对纯度的稀释越明显。若起始比例低到 1% 量级,建议按说明书第 11 步更换新柱再做一次过柱。
流穿液 0.33% 可以直接当作「纯 CD45⁻ 细胞」使用吗?
要看下游。0.33% 是按 Single Cells 7270 个事件、约 24 个门内事件算出来的,按泊松计数误差估算,其 95% 区间大致在 0.21%–0.49%,所以「残留极低」这个结论是稳的,但 0.33% 这个具体数字不宜当作精确值。下游若做单细胞测序、原代培养等对少量污染敏感的实验,建议再补一次去除或加设死细胞与谱系门,把残留压到检测限以下再上机。
阳选后的细胞,磁珠会不会挡住 CD45 抗体、影响流式判读?
本轮数据本身就是反证:阳选产物仍能正常染上 CD45-APC,在 SSC-H / CD45-APC 图上读出 95.0%,门形清晰。英诺思阳选磁珠粒径约 50 nm,只占据细胞约 20%~30% 的抗原表位,不影响后续流式染色,也不需要为此更换特殊克隆号。需要提醒的是,这是纳米磁珠阳选路线的共有特性(进口同类产品亦然),不作为与进口方案的差异点。
PM045 孵育 10 min,为什么别的磁珠要 30 min?
孵育时间由各自说明书的抗体克隆、偶联密度与磁珠表面化学决定,不能互相套用。PM045 说明书(Version 26.01)给的条件是 4 °C 孵育 10 min、磁珠用量 100 μL/mL(细胞按 1×10⁸ cells/mL 重悬);同系列的人源 CD34 磁珠(PH034)则是 4 °C 30 min。把 10 min 的流程套到 30 min 的产品上,或反过来缩短,都可能拉低标记饱和度或增加非特异结合。
十一、咨询与获取支持
如需 anti-mouse CD45 Nanobeads(PM045)的说明书、批次 COA、实验方案建议或试用申请,欢迎通过官网「联系我们」或 product@eynoslifescience.com 与我们沟通。若您正在做组织样本的白细胞富集或 CD45 去除,可以把样本类型、起始 CD45 比例、细胞总数与下游用途告诉我们,我们会协助评估柱规格、磁珠用量与是否需要二次过柱。
附:主要参考文献
- Thomas ML. The leukocyte common antigen family. Annual Review of Immunology. 1989;7:339-369.
- Trowbridge IS, Thomas ML. CD45: an emerging role as a protein tyrosine phosphatase required for lymphocyte activation and development. Annual Review of Immunology. 1994;12:85-116.
- Hermiston ML, Xu Z, Weiss A. CD45: a critical regulator of signaling thresholds in immune cells. Annual Review of Immunology. 2003;21:107-137.
- Altin JG, Sloan EK. The role of CD45 and CD45-associated molecules in T cell activation. Immunology and Cell Biology. 1997;75(5):430-445.
- Rheinländer A, Schraven B, Bommhardt U. CD45 in human physiology and clinical medicine. Immunology Letters. 2018;196:22-32.